
Tiroid Hormonlarının Beyin Gelişimi Üzerine Moleküler Etki Mekanizmaları
Volume 26, Issue 2
July 2012 · Pages 097-101
Tiroid Hormonlarının Beyin Gelişimi Üzerine Moleküler Etki Mekanizmaları
Molecular Mechanisms of Thyroid Hormones on Brain Development
Hakan ÖNER1, Jale ÖNER1
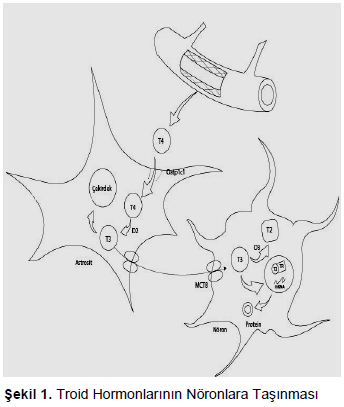
Tiroid hormonları (TH) (T3 ve T4) gebelik döneminde merkezi sinir sisteminin normal fizyolojik ve morfolojik gelişimi için önemlidir. Maternal kandan alınan T4, TH bağlayıcı protein olan transtiretin (TTR) ile fötal beyne taşınır. T4, beyinde astrositlerin yüzeyinde bulunan Oatp1c1 hücre zarı taşıyıcı protein aracılığı ile astrositler tarafından alınır. Astrositlerde D2 enzimi tarafından T3'e dönüştürülür. T3, MCT8 taşıyıcı protein aracılığı ile hücre dışına çıkar ve yine MCT8 aracılığı ile nöronlar tarafından alınır. TH reseptörleri, T3 bağımlı nükleer transkripsiyon aktivatörleridir ve nöronlarda T3'ün biyolojik aktivitelerinin çoğunu düzenlerler.
Sonuç olarak, çalışmalar TH'nın embriyonal beyin gelişimi üzerine etkilerinin TH'nın miktarına, selenoenzimlerin ve TH taşıyıcılarının varlığına, THR'nin fonksiyonlarına bağlı olarak, beynin farklı bölgelerinde ve farklı gelişim aşamalarında değişiklik gösterdiğini ortaya koymuştur.
Thyroid hormones (TH; T4 and T3) are important for the normal physiological and morphological development of the central nervous system. The T4-binding protein, transthyretin (TTR) transports T4 from the maternal blood to the fetal brain. T4 transported to the brain is taken up by astrocytes via the Oatp1c1 cell membrane transporter. T4 is deionated via D2 within the astrocyte and produced T3. Then, it is secreted out of the cell via MCT8 which is a cell surface transporter protein in astrocytes. T3 is taken up via MCT8 by neurons. TH receptors are T3-dependent nuclear transcription activators and mediate the biological activities of T3.
As a result, the studies showed that the effects of TH on embryonal brain development is affected byTH level, presence of selenoenzymes and TH transporters, THR functions and these effects showed variations according to different parts of brain and at different level of development.
Introduction
Tiroid hormonları (TH) (3,5,3'-triiodothyronine, T3; 3,5,3',5'-tetraiodothyronine, T4; 3,3',5'-triiodothyronine, rT3), özellikle gebelik döneminde merkezi sinir sisteminin (MSS) normal fizyolojik ve morfolojik gelişimi için çok önemlidir[1]. Bu hormonlar öncelikle miyelinizasyon ve nöronal\glial hücre farklılaşması ile ilgili gen aktivitelerini düzenlerler[2]. TH'nın fötal beyine ulaşması kompleks bir süreçtir. İnsanlarda fötal tiroid bezi gebeliğin 11-12. haftalarında, birinci trimesterin sonuna yakın bir dönemde olgunlaşmaya başlar ve yaklaşık gebeliğin 16. haftasında TH'nı salgılar[3]. Bu period esnasında, yeterli düzeylerde maternal TH fötal nörolojik gelişim için gereklidir. Maternal hipotiroidizm, doğum sonrası yavrularda zeka geriliği, sağırlık ve spastisite gibi değişik sinir sistemi bozukluklarına yol açar[4-6]. Erken gebelik döneminde maternal TH düzeylerindeki hafif azalmalarda bile düşük IQ'lü yavruların doğduğu son yapılan çalışmalarda öne sürülmüştür[7,8]. TH'nın, fötal nörolojik yapıları etkileyen moleküler mekanizmaları, yapılan çalışmalar ile açıklanmaya çalışılmaktadır.
Beyin Gelişiminde Tiroid Hormon Reseptörlerinin Tanımlanması
TH ve Tiroid Hormon Reseptörleri (THR), fötal TH sentezinin yapıldığı gebeliğin 16-
18. haftalarından önce, 12. haftada insan fötal beyin korteksinde tespit edilmiştir[9,10].
Bu durum maternal TH'nın plasenta aracılığı ile fötusa taşındığını ve bu kritik süreçte
fötal TH sentezinden önce maternal TH'nın beyin gelişimi üzerinde önemli bir rol
oynadığını göstermiştir[11]. TH ve beyin gelişimi hakkında bilinen çoğu bilgi deney
hayvanları üzerinde yapılan çalışmalardan da elde edilmiştir. TH ve THR tiroid bezi
gelişmeden önce fötal sıçan beyninde tespit edilmiştir. Sıçan beyninde, TH etkisi için
kritik dönemin embriyonal 18. gün ile postnatal 21-25. günler arası olduğu bildirilmiştir[12]. Maternal orjinli TH'nın, insanlarda gebeliğin ortasına kadar (16. haftasına kadar), sıçanlarda ise gebeliğin 17.5-18. günlerine kadar fötal
beyin gelişimi için tek kaynak olduğu gösterilmiştir[10,12].
Normal beyin gelişim sürecinde, hücre göçü, dentrit ve akson şekillenmesi, sinaps oluşumu, miyelinizasyon ve gliogenezis gibi olaylar meydana gelir. Gebeliğin erken dönemlerinde maternal TH eksikliği veya yokluğu, fötal vücut gelişiminde azalmaya, serebral kortekste, hipokampusta ve beyincikte moleküler, morfolojik ve fonksiyonel düzeyde geri dönüşümsüz nörolojik hasarlara yol açar. Konjenital hipotiroidi, MSS'inde anormal hücre çoğalması, anormal hücre göçü, nöronların ektopik tabakalanması sonucu anormal beyin tabakalanması, dentritik dallanma, sinaps oluşumu ve miyelinizasyon olaylarında yapısal değişiklikler oluşturmasının yanı sıra, yeni doğanlarda zeka geriliği, motor fonksiyonlarda gelişim bozukluğu, işitsel uyaranlara anormal tepkiler, şaşılık, konuşma, biliş, öğrenme ve hafıza kusurları gibi çeşitli davranış değişikliklerine de neden olur[12-14].
Tiroid Hormonlarının Nörolojik Gelişim Üzerine
Etki Süreci
Nörolojik gelişim üzerine TH'nın etkisi üç evrede
tanımlanmıştır. İlk olarak TH'nın etkisi insanlarda
gebeliğin 16.-20. haftalarında, sıçanlarda 17.5-18.
embriyonik günlerde oluşan fötal tiroid hormon
sentezinden önce oluşur. Bu period esnasında, sadece
maternal olarak sentezlenen anneden gelen TH'na
maruz kalır[3,5,14] ve serebral korteks, hipokampus ve
medial ganglionik eminenste nöronal proliferasyon ve
nöronların göçünü etkiler[15-19]. İkinci evre gelişen
beynin hem fötus hem de anneden TH'nı tedarik ettiği
zaman fötal tiroid fonksiyonlarının başlangıcından
sonraki geri kalan gebelik sürecinde oluşur[3,5,14]. Bu
period esnasında, TH'na bağlı olan süreçler glial hücre
farklılaşması ve göçünün başlaması ve miyelinizasyon
başlangıcı ile birlikte nöron göçü, aksonal büyüme,
dentritik dallanma ve sinaptogenezis bu gibi olayları
içerir. Üçüncü evre neonatal ve postnatal period da
oluşur ve beyne gelen TH tamamen yavru kökenlidir ve
olgunlaşmanın devamı için önemlidir. Bu period
esnasında, hipokampal dentat girusunda ve
serebellumdaki granül hücrelerin göçü, korteksteki
piramidal hücreler ve serebellumdaki Purkinje hücreleri
TH'na duyarlıdır ve TH'na bağlı gliogenezis ve
miyelinizasyon devam eder[12-14].
Tiroksin'in Triiyodotironine Dönüşümünde
Selenoenzimlerin Rolü
Tiroid bezinin temel salgı ürünü, THR'ne etkili bir
şekilde bağlanmayan prohormonu tiroksin (T4) ve daha
az ölçüde triiyodotironin (T3)'dir[20,21]. T4, THR'ine
bağlanmak ve gen ekspresyon profillerindeki TH aracılı
değişiklikleri başlatmak için T3'e dönüştürülmek
zorundadır[21]. T3, biyolojik olarak daha aktiftir ve asıl
olarak T4'ün, iyodotironin deiyodinaz tip 1 ve 2 (D1 ve
D2) tarafından deiyonizasyonu ile periferal dokularda
oluşturulur[20]. İyodotironin deiyodinazlar, TH'nı aktive
veya inaktive eden selenoenzimlerdir. Tip 2 deiyodinaz (D2), T4'ün dış halka iyodin atomunun uzaklaştırılmasını
sağlayarak aktif T3 üretimine neden olur. Bunun aksine,
tip D3 T3'ü inaktive eder ya da 3,3'-diiodothyronine (T2)
or 3,3',5'-triiodothyronine (reverse T3, rT3) oluşturmak
için iç halka iyodin atomunun uzaklaştırılmasını
katalizleyerek T4'ün aktivasyonunu önler. Tip D1, T2, T3
ve rT3 oluşturmak için eşit oranlarda iç veya dış halka
iyodin atomlarının uzaklaştırılmasını katalize eder.
Dolaşımdaki T3, iskelet kaslarında D2'in katkılarına
rağmen, çoğu karaciğer ve böbreklerde D1'in etkisiyle
T4'den üretilir[20,22,23].
Sıçanlarda yapılan deneysel çalışmalar, beyin gelişiminin lokal olarak T3'e deiyodinize olan T4'ün sağlanmasına bağlı olduğunu göstermiştir. Maternal kandan alınan T4, beyinde lokal olarak T3'e dönüştürülür. Beyindeki T3'ün %80'i D2 enzimi tarafından üretilir. D2 astrositlerde, oligodentrositlerde ve nöronlarda ekspre edilmiştir[21,24]. Astrositler, beyinde TH'nın degradasyonundan sorumlu olan D3'ü de ekspre eder.[25,26]. D2'nin zıt etkilerine sahip olan D3, D2 ile birlikte beyinde T3 düzeylerinin sürdürülmesini sağlarlar[27]. Astrositler inaktif rT3'ü T2'ye dönüştüren D1'i içermezler.[28]. Fötal sıçanlarda D2 ilk önce embriyonal 16.5. günde görülür ve postnatal 15. güne doğru tedricen artar. İnsan beyninde D2 expresiyonu ilk önce gebeliğin birinci trimesterinde aynı zamanda T3'ünde burada ölçülebildiği beyin korteksinde tespit edilmiştir. D2, fötal beyin gelişimi için T3'ü uygun konsantrasyonlarda tutmaktan sorumludur[27,28].
Tiroid Hormonlarının Taşınması
TH amino asit türevi hormonlardır ve organik anyon
taşıyıcıları (Oatp1c1,Oatp1a2 ve Oatp1a4), L-tipi amino
asit taşıyıcıları (Lat1 ve Lat2) ve monokarboksilat
taşıyıcıları (MCT8 ve MCT10) aracılığı ile hücre zarından
hücre içine taşınır. MCT8, primer TH taşıyıcısı olarak
bilinmektedir.[29-34]. L-sistin ve L-glutamat sodium
bağımsız değiştirici (xCT) olan değişmiş amino asitleri
negatif olarak taşıyabilen başka bir amino asit taşıyıcı
daha vardır ki, Lat taşıyıcılara yakın özellikler gösterir[35]. Kemiricilerde TH'nın giriş yolu, koroid pleksus
yoluyla beyin omurilik sıvısına (BOS) giren bazı TH ile
serebral dolaşım ve kan-beyin bariyeri yolu ile olur. T4,
TH bağlayıcı protein olan transtiretin (TTR) ile beyne
taşınır. Kan yoluyla beyine taşınan T4, endotelyal
hücreler üzerinden geçer ve astrositlerin yüzeyinde
bulunan Oatp1c1 hücre zarı taşıyıcı protein aracılığıyla,
astrositler tarafından alınır. Astrositlerde D2 aracılığı ile
deiyonize edilerek T3 üretilir. T3, MCT8 aracılığı ile hücre
dışına çıkar ve yine MCT8 aracılığı ile oligodentrositler
ve nöronlar tarafından hücre içine alınır. Hücre içinde T3,
ya yer değiştirip THR'ne bağlanır ya da D3 aracılığı ile
biyolojikal olarak inaktif olan T2'ye metabolize olabilir.
İnsanlarda MCT8 eksikliğinin şiddetli zeka geriliği, kas
hipotonisi ve hipoplazisi gibi kemiricilerden daha büyük
nörolojik hasara yol açtığı bildirilmiştir. İnsanlarda
gelişmekte olan nöronlarda mevcut olmayan, gelişen
sıçan beyninde tanımlanan Lat2'nin bu durum için bir
aday olduğu öne sürülmüştür[36,37].
Beyin nöronlarında MCT8, T3'ün nöronal alınımı için esastır. MCT8 yetersiz farelerde, T3 ve T4'ün beyine alınımı azalır. MCT8 serebral mikrodamarlarda tanımlanmıştır ve insan, fare ve sıçan beyninde Kan- Beyin Bariyerinde (KBB) gösterilmiştir. Oatp 1c1 insan KBB çok az, fare ve rat KBB'de güçlü olarak ekspre edilmiştir. MCT8 yetersiz farelerde Allan–Herndon– Dudley Syndrome (AHDS) hastalarda bulunan nörolojik değişikliklerin farelerde gözlemlenmemesinin nedeni olarak Oatp 1c1'in insanlara oranla farelerde daha yüksek olarak bulunması gösterilmiştir. Oatp 1a2 ve Oatp 1a4 beyinde ekspre edilmiştir. Lat1 ve Lat2 beyin kapiler endotel hücrelerinin luminal ve abluminal membranlarında ekspre edilmiştir. Lat1 ekspresiyonu Lat2'den daha yüksektir. xCT beyinde ekspre edilmiştir. xCT oksidatif strese karşı nöronları korur[35].
Tiroid Hormon Reseptörlerinin Rolü
TH, ağırlıklı olarak nükleer THR'ne bağlanarak
biyolojik etki gösterir, fakat belirli no-genomik etkileri de
öne sürülmüştür[38-41]. Bu reseptörler beyinde
hormonal sinyali hücresel bir yanıta uyum sağlamada
merkezi bir role sahiptirler[11,42]. Beyindeki T3
biyoyararlanımı, TH miktarına, kan-beyin bariyeri yoluyla taşınmasına, T4'ün D2 ile deiyonizasyonuna ve D3
tarafından yıkımlanmasına bağlıdır. THR'leri T3'ün
biyolojik aktivitelerinin çoğunu düzenler[2,5,43,44].
THRα ve THRβ olmak üzere iki tip TH reseptör geni ve
TRα1, TRβ1, TRβ2 and TRβ3 olarak dört faklı reseptör
izoformu vardır ve bunlar arasında, sadece TRα1, TRβ1
ve TRβ2 T3-bağımlı nükleer transkripsiyon aktivatörleri
olarak kabul edilir. Beyinde her iki tip THR geni bulunur.
Yetişkin sıçan beyninde, tüm THR'nin %70-80'inden
daha fazlası THRα1 izoformudur. Bu reseptör proteinler
baskın olarak beyin ve beyincikte bulunur. Hem
insanlarda hem de kemiriciler de THRα1 isoformu fötal
beyin gelişimi esnasında önemli bir rol oynar. THRα1
mRNA fötal sıçan beyninde nöral tüpte embriyonal 11.5.
günde, diensefelon ve ventral rombensefelonda
embriyonal 12.5. günde tespit edilmiştir[45]. Bu
bölgelerde bulunan THR'nin gebeliğin erken
dönemlerinde bu bölgelerde maternal T4'den üretilen
T3'ün biyolojik etkilerini düzenlediğine inanılır. THRβ
izoformları daha çok postnatal dönemde hipokampal
piramidal ve granül hücreleri, paraventrikular hipotalamik
nöronlar ve beyinciğin Purkinje hücreleri gibi spesifik
nöronlarda tanımlanmıştır[46,47]. THRβ isoformları
baskın olarak görme ve işitme sistemlerinin gelişimi
üzerine TH'nın etkilerini düzenler[48]. THR eksikliğinin
hipotiroidizimde görülen anormal beyin gelişimine yol
açmayabileceğini, T3 eksikliğinin daha zararlı olduğunu
öne süren çalışmalarda mevcuttur[11]. Bernal[11]
THRα1 knock out farelerde, fareler hipotiroidi olsa bile
normal beyin gelişimine sahip olduğunu göstermiştir.
THRα1 yokluğunun gelişim esnasında serebellar granül
hücre göçünün etkilenmediği başka bir çalışmada da öne
sürülmüştür[49].
TRα1 mRNA beyinde hem nöronal hem de glial hücre tiplerinde yaygındır. TH'larının astrositlerin fonksiyonunu değiştirdiğini gösteren çok sayıda deliller olmasına rağmen, astrositlerde THR'rinin varlığı tartışmalıdır[50,51]. Astrositlerdeki THR'nin varlığı, oligodentrositler ve nöronlar ile karşılaştırıldığında daha düşük konsantrasyonlarda olduğu tespit edilmiştir[52-54].
Sonuç olarak, çalışmalar karşılaştırıldığında TH'nın embriyonal beyin gelişimi üzerine etkilerinin TH'nın miktarına, selenoenzimlerin ve TH taşıyıcılarının varlığına, THR'nin fonksiyonlarına bağlı olarak, beynin farklı bölgelerinde ve farklı gelişim aşamalarında değişiklik göstermektedir.
References
- Neale DM, Cootauco AC, Burrow G. Thyroid disease in pregnancy. Clin Perinatol 2007; 34: 543–557.
- Bernal J. Thyroid hormones and brain development. Vitam Horm 2005; 71: 95–122.
- Obregon MJ, Calvo RM, Del Rey FE, de Escobar GM. Ontogenesis of thyroid function and interactions with maternal function. Endocr Dev 2007; 10: 86–98.
- Glinoer D. Pregnancy and iodine. Thyroid 2001; 11: 471–481.
- de Escobar GM, Obregon MJ, del Rey FE. Role of thyroid hormone during early brain development. Eur J Endocrinol 2004; 151: 25–37.
- Pearce EN. What do we know about iodine supplementation in pregnancy? J Clin Endocrinol Metab 2009; 94: 3188–3190.
- LaFranchi SH, Austin J. How should we be treating children with congenital hypothyroidism? J Pediatr Endocrinol Metab 2007; 20: 559–578.
- Gyamfi C, Wapner RJ, D'Alton ME. Thyroid dysfunction in pregnancy: the basic science and clinical evidence surrounding the controversy in management. Obstet Gynecol 2009; 113: 702–707.
- Calvo RM, Jauniaux E, Gulbis B, et al. Fetal tissues are exposed to biologically relevant free thyroxine concentrations during early phases of development. J Clin Endocrinol Metab 2002; 87: 1768–1777.
- Kester MH, de Mena RM, Obregon MJ, et al. Iodothyronine levels in the human developing brain: major regulatory roles of iodothyronine deiodinases in different areas. J Clin Endocrinol Metab 2004; 89: 3117–3128.
- Bernal J. Thyroid hormone receptors in brain development and function. Nat Clin Pract Endocrinol Metab 2007; 3: 249–259.
- Porterfield SP, Hendrich CE. The role of thyroid hormones in prenatal and neonatal neurological development current perspectives. Endocr Rev 1993; 14: 94–106.
- Bernal J, Guadano-Ferraz A, Morte B. Perspectives in the study of thyroid hormone action on brain development and function. Thyroid 2003; 13: 1005–1012.
- Narayanan CH, Narayanan Y. Cell formation in the motor nucleus and mesencephalic nucleus of the trigeminal nerve of rats made hypothyroid by propylthiouracil. Exp Brain Res 1985; 59: 257–266.
- Lucio RA, Garcia JV, Ramon Cerezo J, Pacheco P, Innocenti GM, Berbel P. The development of auditory callosal connections in normal and hypothyroid rats. Cereb Cortex 1997; 7: 303–316.
- Cuevas E, Auso E, Telefont M, et al. Transient maternal hypothyroxinemia at onset of corticogenesis alters tangential migration of medial ganglionic eminence-derived neurons. Eur J Neurosci 2005; 22: 541–551.
- Auso E, Lavado-Autric R, Cuevas E, et al. A moderate and transient deficiency of maternal thyroid function at the beginning of fetal neocorticogenesis alters neuronal migration. Endocrinology 2004; 145: 4037–4047.
- Calvo R, Obregon MJ, de Ona CR, del Rey FE, de Escobar GM. Congenital hypothyroidism, as studied in rats. Crucial role of maternal thyroxine but not of 3,5,3'-triiodothyronine in the protection of the fetal brain. J Clin Invest 1990; 86: 889–899.
- Woods RJ, Sinha AK, Ekins RP. Uptake and metabolism of thyroid hormones by the rat foetus in early pregnancy. Clin Sci (Lond) 1984; 67: 359–363.
- Bianco AC, Salvatore D, Gereben B, Berry MJ, Larsen PR. Biochemistry, cellular and molecular biology, and physiological roles of the iodothyronine selenodeiodinases. Endocr Rev 2002; 23: 38–89.
- Crantz FR, Silva JE, Larsen PR. An analysis of the sources and quantity of 3,5,3'-triiodothyronine specifically bound to nuclear receptors in rat cerebral cortex and cerebellum. Endocrinology 1982; 110: 367–375.
- Bianco AC, Kim BW. Deiodinases: implications of the local control of thyroid hormone action. J Clin Invest 2006; 116: 2571–2579.
- Maia AL, Kim BW, Huang SA, Harney JW, Larsen PR. Type 2 iodothyronine deiodinase is the major source of plasma T3 in euthyroid humans. J Clin Invest 2005; 115: 2524–2533.
- Zoeller RT. New insights into thyroid hormone action in the developing brain: the importance of T3 degradation. Endocrinology 2010; 151: 5089–5091.
- Courtin F, Chantoux F, Francon J. Thyroid hormone metabolism by glial cells in primary culture. Mol Cell Endocrinol 1986; 48: 167–178.
- Ramauge M, Pallud S, Esfandiari A, et al. Evidence that type III iodothyronine deiodinase in rat astrocyte is a selenoprotein. Endocrinology 1996; 137: 3021–3025.
- Santini F, Pinchera A, Ceccarini G, et al. Evidence for a role of the type III-iodothyronine deiodinase in the regulation of 3,5,3'-triiodothyronine content in the human central nervous system. Eur J Endocrinol 2001; 144: 577– 583.
- Esfandiari A, Gavaret JM, Lennon AM, Pierre M, Courtin F. Sulfation after deiodination of 3,5,3'-triiodothyronine in rat cultured astrocytes. Endocrinology 1994; 135: 2086–2092.
- Abe T, Kakyo M, Sakagami H, et al. Molecular characterization and tissue distribution of a new organic anion transporter subtype (oatp3) that transports thyroid hormones and taurocholate and comparison with oatp2. J Biol Chem 1998; 273: 22395–22401.
- Friesema EC, Docter R, Moerings EP, et al. Thyroid hormone transport by the heterodimeric human system L amino acid transporter. Endocrinology 2001; 142: 4339– 4348.
- Friesema EC, Ganguly S, Abdalla A, et al. Identification of monocarboxylate transporter 8 as a specific thyroid hormone transporter. J Biol Chem 2003; 278: 40128– 40135.
- Friesema EC, Jansen J, Heuer H, et al. Mechanisms of disease: psychomotor retardation and high T3 levels caused by mutations in monocarboxylate transporter 8. Nat Clin Pract Endocrinol Metab 2006; 2: 512–523.
- Friesema EC, Jansen J, Jachtenberg JW, et al. Effective cellular uptake and efflux of thyroid hormone by human monocarboxylate transporter 10. Mol Endocrinol 2008; 22: 1357–1369.
- Friesema EC, Visser WE, Visser TJ. Genetics and phenomics of thyroid hormone transport by MCT8. Mol Cell Endocrinol 2010; 322: 107–113.
- Kinne A, Schülein R, Krause G. Primary and secondary thyroid hormone transporters. Thyroid Res 2011; 4: 7.
- Wirth EK, Roth S, Blechschmidt C, et al. Neuronal 3',3,5- triiodothyronine (T3) uptake and behavioral phenotype of mice deficient in Mct8, the neuronal T3 transporter mutated in Allan–Herndon–Dudley syndrome. J Neurosci 2009; 29: 9439–9449.
- Williams GR. Neurodevelopmental and neurophysiological actions of thyroid hormone. J Neuroendocrinol 2008; 20: 784–794.
- Wu Y, Koenig R J. Gene regulation by thyroid hormone. Trends Endocrino Metab 2000; 11: 207–211.
- Zhang J, Lazar MA. The mechanism of action of thyroid hormones. Annu Rev Physiol 2000; 62: 439–466.
- Yen PM, Ando S, Feng X, et al. Thyroid hormone action at the cellular, genomic and target gene levels. Mol Cell Endocrinol 2006; 246: 121–127.
- Cheng SY, Leonard JL, Davis PJ. Molecular aspects of thyroid hormone actions. Endocr Rev 2010; 31: 139–170.
- Nunez J, Celi FS, Ng L, Forrest D. Multigenic control of thyroid hormone functions in the nervous system. Mol Cell Endocrinol 2008; 287:1–12.
- Flamant F, Samarut J. Thyroid hormone receptors: lessons from knockout and knock-in mutantmice. Trends Endocrinol Metab 2003; 14: 85–90.
- Lazar MA. Thyroid hormone receptors: multiple forms, multiple possibilities. Endocr Rev 1993; 14: 184–193.
- Bradley DJ, Towle HC, Young WS III. Spatial and temporal expression of alpha- and beta-thyroid hormone receptor mRNAs, including the beta 2-subtype, in the developing mammalian nervous system. J Neurosci 1992; 12: 2288– 2302.
- Bradley DJ, Young WS III, Weinberger C. Differential expression of alpha and beta thyroid hormone receptor genes in rat brain and pituitary. PNAS 1989; 86: 7250– 7254.
- Horn S, Heuer H. Thyroid hormone action during brain development: more questions than answers. Mol Cell Endocrinol 2010; 315: 19–26.
- Jones I, Srinivas M, Ng L, Forrest D. The thyroid hormone receptor beta gene: structure and functions in the brain and sensory systems. Thyroid 2003; 13: 1057–1068.
- Yacubova E, Komuro H. Intrinsic program for migration of cerebellar granule cells in vitro. J Neurosci 2002; 22: 5966– 5981.
- Trentin AG. Thyroid hormone and astrocyte morphogenesis. J Endocrinol 2006; 189: 189–197.
- Mohacsik P, Zeold A, Bianco AC, Gereben B. Thyroid hormone and the neuroglia: Both source and target. J Thyroid Res 2011; 2011: 1-16
- Ortiz-Caro J, Yusta B, Montiel F. Identification and characterization of L-triiodothyronine receptors in cells of glial and neuronal origin. Endocrinology 1986; 119: 2163– 2167.
- Puymirat J. Thyroid receptors in the rat brain. Prog Neurobiol 1992; 39: 281–294.
- Yusta B, Besnard F, Ortiz-Caro J, et al. Evidence for the presence of nuclear 3,5,3'-triiodothyronine receptors in secondary cultures of pure rat oligodendrocytes. Endocrinology 1988; 122: 2278–2284.