Sıçan Duyusal Nöronlarında KCl ve Kapsaisin ile İndüklenen Hücre İçi Kalsiyum Cevapları Üzerinde Silostazolun Etkisi
Volume 28, Issue 1
February 2014 · Pages 025-028
Sıçan Duyusal Nöronlarında KCl ve Kapsaisin ile İndüklenen Hücre İçi Kalsiyum Cevapları Üzerinde Silostazolun Etkisi
Effect of Cilostazol on KCl and Capsaicin Induced Increase in Intracellular Calcium Signaling in Rat Sensory Neurons
Oktay BURMA, Mete ÖZCAN1, Emine KAÇAR2, Ayhan UYSAL, Selim KUTLU3
1Fırat Üniversitesi, Tıp Fakültesi, Biyofizik Anabilim Dalı, Elazığ, TÜRKİYE 2Fırat Üniversitesi, Tıp Fakültesi, Fizyoloji Anabilim Dalı, Elazığ, TÜRKİYE 3Necmettin Erbakan Üniversitesi, Meram Tıp Fakültesi, Fizyoloji Anabilim Dalı, Konya, TÜRKİYE
Amaç: Silostazol, spesifik cAMP fosfodiesteraz III inhibitorü olmakla birlikte medikal olarak bir
periferik arter hastalığı olan intermitan klodikasyon tanılı hastalarda fiziksel aktivite esnasında
bacakta meydana gelen ağrının giderilmesinde kullanılmaktır. Bu çalışmanın amacı, ağrı
çalışmaları için uygun bir deneysel model olan sıçan dorsal kök gangliyonlarında (DKG)
silostazolun hücre içi kalsiyum ([Ca+2]i) düzeyi üzerindeki etkisini belirlemekti.
Gereç ve Yöntem: DKG nöronları 2 günlük Wistar cinsi sıçanlardan çeşitli enzimatik ve mekanik
uygulamalarla elde edildi. DKG nöronları 1 μmol Fura-2 AM boyasıyla boyanarak [Ca+2]i
seviyesindeki değişimler oransal florasan yöntemle tespit edildi. Kültürde bulunan hücreler 340-
380 nm dalga boyunda uyarılıp 510 nm dalga boyunda kayıt yapıldı. Her bir nöronun 340/380
(bazal- pik) oranında bazal kalsiyum seviyesi tespit edildikten sonra kültür ortamına KCl (30 mM)
ve kapsaisin (1 μM) uygulandı. Silostazol tek başına veya KCl (30 mM) ve kapsaisin (1μM) ile
birlikte kültür ortamına uygulanmasıyla küçük çapa sahip DKG nöronlarında meydana gelen
[Ca+2]i değişimi incelendi. Elde edilen veriler Student's t-testi kullanılarak istatiksel olarak
değerlendirildi ve P<0.05 istatistiki olarak anlamlı kabul edildi.
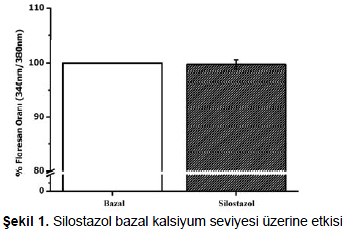
Bulgular: Silostazol kültür ortamına öncelikle olarak tek başına uygulandı ve bu uygulama
sonucunda hücre içi bazal Ca+2 seviyesinde anlamlı bir değişim gözlenmedi (bazal=100.0±0.0 ve
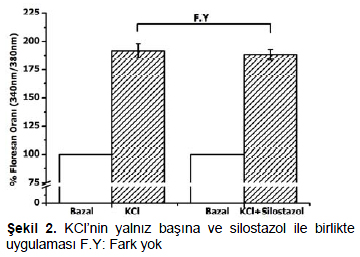
silostazol =%99.8±0.8). Ortama KCl uygulanması [Ca+2]i seviyesini %190.3±6.2 seviyesine
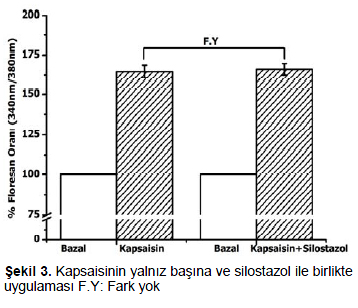
yükseltti (p<0.001). Kapsaisin uygulandığında ise [Ca+2]i seviyesi %165.6±4.1 değerine ulaştı
(P<0.001). Bununla birlikte ortama KCl ve kapsaisin ile birlikte silostazol uygulandığında ise
[Ca+2]i seviyesi sırası ile %189.4 ± 4.6 ve %166.0 ± 3.8 idi.
Sonuç: Bu çalışmada ile silostazolün DKG nöronlarında [Ca+2]i düzeyinde herhangi bir değişime
neden olmadığı belirlendi. Silostazol ağrı kesici etkisini muhtemelen hücre içi farklı
mekanizmalarla gerçekleştirmektedir.
Objective: Cilostazol, a specific cAMP phosphodiesterase III inhibitor, is used for medical
treatment of intermittent claudication in peripheral artery disease to prevent leg pain during
physical activity. Dorsal root ganglion (DRG) neurons are eligible experimental model for pain
investigations. Aim of this study was to figure out the effect of cilostazol on intracellular calcium
([Ca2+]i) signaling in cultured rat DRG neurons.
Materials and Methods: DRG neurons were grown in primary culture following enzymatic and
mechanical dissociation of ganglia from 2-day-old Wistar rats. DRG neuronal cultures were
loaded with 1μmol Fura-2AM and [Ca2+]i responses to stimulation were assessed by using
fluorescent ratiometry. Cultured cells were excited at 340 and 380nm and emission was recorded
at 510nm. Responses were determined by the change in 340/380 ratio (basal-peak) for individual
neurons. After basal recordings, KCl (30mM) and capcaicin (1μM) applied to medium for
induction of [Ca2+]i. Cilostazol treated alone or co-administered with KCl and capcaicin for
determining the possible changes in calcium signaling in small size DRG neurons. Data were
analyzed by using Student's t test, P level of <0.05 defining statistical significance.
Results: Firstly exposure to cilostazol failed to cause any significant change in basal [Ca2+]i
response (basal=100.0±0.0 and cilostazol =99.8±0.8 %). KCl and capcaicin had significant
increase in [Ca2+]i responses to 190.3±6.2% and 165.6±4.1% (respectively, P< 0.001). But coapplication
of cilostazol with KCl and capcaicin did not alter the KCl and capcaicin induced
elevation in [Ca2+]i (189.4 ±% 4.6 and 166.0 ± 3.8% respectively).
Conclusion: In conclusion, the results of present study suggest that cilostazol has no effect on
[Ca2+]i signaling in rat sensory neurons in vitro. It seems cilostazol may activate other
mechanism(s) at cellular level rather than modulating calcium signaling in DRG neurons.
Introduction
Periferal arter hastalığı (PAH) dünya genelinde en
önemli kardiyovasküler problemlerden biridir[1]. Diyabet,
hipertansiyon, hiperlipidemi ve sigara kullanımı PAH
riskini artırmaktadır[2,3]. Alt ekstremiteleri tutan orta
dereceli PAH'nın en sık rastlanan semptomu aralıklarla
ortaya çıkan ağrıdır ve genellikle intermitan klodikasyon
şeklinde isimlendilen bir yürüme bozukluğu şikayetidir[4]. İntermitan klodikasyon kişide egzersiz ve yüreme
yeteneğini sınırlamakta ve egzersize bağlı iskemi
nedeniyle bacak kaslarında ağrı meydana gelmektedir.
İntermitan klodikasyonun tedavi seçenekleri arasında
yaşam stilinin değişimi, ilaç tedavisi ve egzersiz yer
almaktadır[5].
Silostazol antiplatelet, antitrombotik ve vazodilatatör
etkilere sahip selektif fosfodiesteraz-3 inhibitörüdür ve
İntermitan klodikasyonun periferal vasküler hastalık
tedavisinde kullanılmaktadır[6,7].
Ağrı iletimi periferal reseptörlerin (nosiseptör)
uyarılmasını takiben, dorsal kök gangliyonları (DKG)
nöronları, spinal kord ve beyin sapını da içeren ağrı
yolakları vasıtasıyla, merkezi sinir sisteminin daha üst
seviyelerine bu nosiseptörler ile iletilir[8]. Yapılan
çalışmalar doku hasarını takiben DKG nöronlarındaki
voltaj ve ligand kapılı iyon kanallarının fonksiyonunda ve
ekspresyonunda değişim meydana getirdiğini
göstermiştir[9,10]. Bununla birlikte, bu iyon kanallarının
farmakolojik, fizyolojik ve moleküler yapısı tam anlamıyla
aydınlatılamamıştır[11].
DKG nöronları çaplarına göre küçük, orta ve büyük
olmak üzere üç alt sınıfa ayılmaktadır.[12] Küçük çapa
sahip olan DKG nöronları (<30 μm) potansiyel
nosiseptörler olarak değerlendirilirken, daha büyük çapa
sahip nöronlar ise genelde non-nosiseptif nöron oldukları
kabul edilir[12].
Kalsiyum iyonu, aralarında nörotransmitter salınımı,
gen ekspresyonu, mRNA stabilitesi ve nöronal
uyarılabilirlik gibi birçok fizyolojik olayın
düzenlenmesinde rol oynayan bir “ikincil haberci”dir.
Ayrıca hücre içine yüksek miktarda Ca+2 akışı ve hücre
içi kalsiyum konsantrasyonunun ([Ca2+]i) aşırı artışı
nöronal hasara yol açarak pek çok nörodejeneratif
hastalığın patogenezinde rol oynamaktadır. Bu sebeple
[Ca+2]i sıkı bir kontrol altındadır[13].
Bu çalışmanın amacı intermitan klodikasyonun
tedavisinde kullanılan silostazolun küçük çapa sahip
DKG nöronlarında [Ca2+]i
düzeyi üzerine olan etkisini
kalsiyum görüntüleme yöntemi kullanarak incelemekti.
Material and Method
Sıçan Dorsal Kök Ganglion Hücrelerinin Primer
Kültürünün Hazırlanması: Bu çalışmada Fırat
Üniversitesi Deneysel Araştırma Merkezi'nden temin
edilen 1-2 günlük Wistar cinsi yavru sıçanlar kullanıldı.
Sıçan DKG sinir hücrelerinin primer kültürü daha önce
detaylı olarak yayınlanan protokole göre çeşitli enzimatik ve mekanik yöntemlerle izole edilerek tek hücrelere
ayrıştırıldı[14].
İzole edilen hücreler, 12 mm çapa sahip daha
önceden poli-D-lizin ve laminin kaplanmış cam lamellere
(BD BioCoat, ABD) ekildi. Bu işlemin ardından
inkübasyon amacıyla 37ºC'de %5 CO2 içeren nemli bir
inkübatöre (Heraus, Almanya) bırakıldı. Lamel üzerine
DKG nöronlarının iyice yapışması sağlamak amacıyla en
az 4-6 saat süreyle inkübe edildi ve daha sonra kalsiyum
görüntüleme deneylerinde kullanıldı.
Hücre İçi Kalsiyum Görüntüleme ve Görüntü
Analizleri: Hücrelerin Fura-2-acetoxymethyl ester (AM)
ile yüklenmesi (floresan işaretleme): Bu çalışmada 1
günlük DKG hücreleri kullanıldı. Bu hücrelerin kültür
ortamında 20 gün yaşatılmasına rağmen, 1 günlük
hücrelerin kullanılmasının sebebi aksonal ve dendritik
uzantıların floresan kalsiyum görüntüleme deneylerindeki
hesaplamaları etkilemesidir. Floresan boya yüklemesi
amacıyla hücreler Fura-2 AM (Fura-2 acetoxymethyl
ester) (5 μM, Molecular Probes, İngiltere) ile oda
sıcaklığında (≈ 22°C) bir saat inkübe edildi. Yüklemeyi
takiben hücreler 20 dk içerisinde NaCl esaslı hücre dışı
solüsyonu [135 mM NaCl, 5.9 mM KCl, 1.5 mM CaCl2,
1.2 mM MgCl2, 11.5 mM glikoz, 11.6 mM HEPES
(ozmolarite 310 - 320 mOsm, sukroz) ile en az üç kez
daha yıkanarak, hücre dışındaki boya uzaklaştırıldı ve
fura-2'nin deesterifikasyonu sağlandı. Bu işlemi takiben
hücreler, mikroinkübasyon kayıt çemberine (Warner
Instruments, ABD) aktarıldı ve mikroinkübasyonperfüzyon
sistemi (Warner Instruments, ABD) aracılığı ile
(1 ml/dakika) sürekli solüsyonlar perfüze edildi ve bu
hücreler floresan ataşmanlı Nikon TE 2000S ters
mikroskop altında gerektiğinde görsel olarak
değerlendirildi. Bir Xenon ışık kaynağından (LS- Sutter
Instr, ABD) UV ışını hızlı bir otomatize filtre sürücüsüne
(Lambda-2, Sutter Instr, ABD) gönderildi. Işınlar bu filtre
sürücüsünün sahip olduğu 340 ve 380 nm filtrelerden
(Chroma, ABD) geçerek mikroskop optikleri (Nikon TE
2000 S, S-flour 40X objektif, NA=1.4) aracılığı dual
eksitasyon ve 510 nm'de emisyon gerçekleşmesini
sağladı. Dijital bir CCD kamera (ORCA 285, Hamamatsu
Photonics, Hamamatsu, Japonya) aracılığı ile floresan
görüntüleri ve veri kazanım-yazılım programı (sPCI,
ComPix) aracılığı ile bilgisayar hafızasına kayıt edildi ve
bu işlemi takiben floresan oranları off-line olarak analiz
edildi.
Çalışmada kullanılan silostazol ve KCl deiyonize
suda, kapsaisin (Sigma) ise dimetil sülfoksit (DMSO)
içerisinde çözüldü. Hücreler, perfüzyon sistemi aracılığı
ile sadece kısa süreli kapsaisin (1 μM) ve yüksek K+ (30
mM) uygulamasına maruz bırakıldı. DMSO'nun
uygulanan konsantrasyonunun [Ca+2]i düzeyi üzerine
etkisi olmadığı belirlendi.
İstatistiksel Analizler: Bütün veriler ortalama ± standart
hata (ort±SH) olarak belirlendi. İstatistiksel
karşılaştırmalar için Student's t testi kullanıldı. P< 0.05
istatistiksel anlamlılık düzeyi olarak kabul edildi.
Results
Bu çalışmanın başlangıcında ilk olarak silostazolun
bazal [Ca+2]i düzeyi üzerine etkinliği incelendi.
Silostazolun (1μM) DKG nöronlarında bazal kalsiyum
seviyesi üzerine etkisinin olmadığı tespit edildi. Bazal
kalsiyum seviyesi %100.0±0.0 kabul edildiğinde
silostazol uygulaması ardından ölçülen kalsiyum seviyesi
%99.8±0.8 idi (Şekil 1). Bu uygulamanın ardından [Ca+2]i
değişiklikleri takip edebilmek amacıyla küçük çaplı DKG
hücrelerinin kapsaisin ve yüksek K+ ile uyarıma
cevaplılığı tespit edildi. Uygulamalar öncesi floresan
oranı (340/380 nm) yaklaşık olarak 0.6 ve 0.8
arasındaydı.
Şekil 1: Silostazol bazal kalsiyum seviyesi üzerine etkisi
Non-spesifik membran depolarizasyonu meydana
getiren KCl uygulaması ile meydana gelen [Ca+2]i
seviyesindeki değişim tüm hücre alt tiplerinde (küçük,
orta ve büyük) daha önceki çalışmalarla[15] uyumlu bir
şekilde benzerdi. Kapsaisin duyarlı olan nosiseptif
nöronlar daha önce yapılan bir çalışma[15] ile ortaya
konulan kapsaisin uygulamasının küçük çaplı DKG
nöronlarında büyük ve orta çaplı DKG nöronlarına oranla
çok daha yüksek oranda ve belirgin bir [Ca+2]i artışına yol
açması, bu çalışmada elde edilen kapsaisin cevapları ile
benzerlik göstermektedir. Mevcut deney koşullarında
fura-2 ile yüklenmiş stabil (bazal) istirahat floresan
sinyalleri veren DKG hücrelerinden en az 5 dk süresince
stabil floresan sinyalleri kayıt edilebilmiştir. Bu kaydın
devamında yüksek konsantrasyon KCl (30mM)
uygulandığında küçük çaplı DKG nöronlarında meydana
gelen [Ca+2]i konsantrasyonundaki artış %190.3±6.2
(n=20) iken, 1μM silostazol+KCl uygulandığında
meydana gelen artış %189.4± 4.6 (n=20) idi (Şekil 2).
KCl'ün yalnız başına ve silostazol ile birlikte uygulaması
arasında istatistiksel açıdan farklılık bulunamadı.
Şekil 2: KCl'nin yalnız başına ve silostazol ile birlikte
uygulaması F.Y: Fark yok
Benzer şekilde kapsaisin uygulandığında, [Ca+2]i
konsantrasyonu küçük çaplı DKG nöronlarında önemli
ölçüde artmıştı. Bu meydana gelen artış % 165.6±4.1
(n=20) iken, 1 μM silostazol+kapsaisin uygulandığında
meydana gelen artışın % 166.0± 3.8 (n=20) olduğu tespit
edildi (Şekil 3). Kapsaisinin yalnız başına ve silostazol ile
birlikte uygulamasının küçük çaplı DKG nöronlarında
[Ca+2]i seviyesindeki artış incelendiğine farklılık
bulunmamaktaydı.
Şekil 3: Kapsaisinin yalnız başına ve silostazol ile birlikte
uygulaması F.Y: Fark yok
Discussion
Bu çalışmanın bulguları, duyusal nöronlarda KCl ve
kapsaisin ile indüklenen [Ca+2]i konsantrasyonundaki
artışı, fosfodiesteraz-3 enzim inhibitörü silostazolun
aktive etmediğini göstermektedir.
DKG nöronlarının KCl ve kapsaisin ile uyarılmaya
karşılık oluşan cevapları, çaplara göre sınıflandırıldığında
silostazolun, KCl ve kapsaisin ile birlikte uygulamasının
çap farkı olmaksızın bu nöronları etkilemediği tespit
edildi.
Silostazolun platelet agregasyonunu, intraselluler
cAMP miktarını ve protein kinaz A aktivasyonunu
artırarak meydana getirdiği bilinmektedir[16,17]. Ayrıca
silostazolun kardiyoprotektif etkisinin mitokondriyal
kalsiyum aktiveli potasyum kanallarının (mitoKCa)
açılmasının rolü olabileceği yapılan çalışmalarla ortaya
konulmuştur[18-20]. Buna ilaveten silostazolun yüksek
iletkenlikli kalsiyum bağımlı potasyum kanalları
aracılığıyla hipofiz GH3 hücrelerinde ve feokromositoma
PC12 hücrelerinde arttırdığı gösterilmiştir[21]. Ancak
DKG hücrelerinde yapılan bu çalışmada kalsiyum
bağımlı K+ kanal iletkenliği sorgulanmamıştır.
Tüm bu çalışmalar ilave çalışmalarla silostazolun
DKG nöronlarında da benzer etkilerinin olup olmadığını
incelenmesi gerektiğini ortaya koymaktadır.
Sonuç olarak; spesifik cAMP fosfodiesteraz 3
inhibitörü olan silostazolun duyusal nöronlar üzerine meydana getirebileceği olası etkilerin ve hücresel
mekanizmalarının ilave çalışmalarla sorgulanması
gerekmektedir.
References
Whayne TF. A Review of the role of anticoagulation in the
treatment of peripheral arterial disease. Int J Angiol 2012;
21: 187-194.
Criqui MH, Fronek A, Barrett-Connor E, et al. The
prevalence of peripheral arterial disease in a defined
population. Circulation 1985; 71: 510-515.
Criqui MH, Denenberg JO, Langer RD, Fronek A. The
epidemiology of peripheral arterial disease: Importance of
identifying the population at risk. Vasc Med 1997; 2: 221-226.
Schainfeld RM. Management of peripheral arterial disease
and intermittent claudication J Am Board Fam Prac 2001;
14: 443-450.
Hankey GJ, Norman PE, Eikelboom JW. Medical treatment
of peripheral arterial disease. JAMA 2006; 295: 547-553.
Kawanabe Y, Takahashi M, Jin X, et al. Cilostazol prevents
endothelin-induced smooth muscle constriction and
proliferation. PLoS One 2012; 7: 44476.
Sallustio F, Rotondo F, Di Legge S, Stanzione P. Cilostazol
in the management of atherosclerosis. Curr Vasc
Pharmacol 2010; 8: 363-372.
Almeida TF, Roizenblatt S, Tufik S. Afferent pain pathways:
a neuroantomical review. Brain Res 2004; 1000: 40-56.
Devor M, Janig W, Michaelis M. Modulation of activity in
dorsal root ganglion neurons by sympathetic activation in
nerve-injured rats. J Neurophysiol 1994; 71: 38-47.
Devor M. The pathophysiology of damaged peripheral
nerves. Textbook of Pain. 3rd Edition. Wall PD, Melzack, R.
(Editors). Churchill Livingstone, Edinburgh, 1994; 79–101.
Moldovan M, Alvarez S, Romer Rosberg M, Krarup C.
Axonal voltage-gated ion channels as pharmacological
targets for pain. Eur J Pharmacol 2013; 708:105-112.
Harper AA, Lawson SN. Conduction velocity is related to
morphological cell type in rat dorsal root ganglion neurons.
J Physiol 1985; 359: 31-46.
Miller RJ. The control of neuronal Ca2+ homeostasis. Prog
Neurobiol 1991; 37: 255-285
Ozcan M, Ayar A, Serhatlioglu I, et al. Orexins activates
protein kinase C-mediated Ca(2+) signaling in isolated rat
primary sensory neurons. Physiol Res 2010; 59: 255-262.
Özcan M, Alçin E, Kuzgun KT, Keleştimur H, Ayar A. Sıçan
duyusal sinir hücresi alt tiplerinde kalsiyum sinyallerinin
incelenmesi: Kapsaisin duyarlılığı, nonspesifik
depolarizasyon ve hücre çapı arasındaki ilişki. Turkiye
Klinikleri J Med Sci 2010; 30: 544-552.
Kimura Y, Tani T, Kanabe T, Watanabe K. Effect of
cilostazol on platelet aggregation and experimental
thrombosis. Arzneimittelforschung 1985; 35: 1144-1149.
Tanaka K, Gotoh F, Fukuuchi Y, et al. Effects of a selective
inhibitor of cyclic AMP phosphodiesterase on the pial
microcirculation in feline cerebral ischemia. Stroke 1989;
20: 668-673.
Xu W, Liu Y, Wang S, et al. Cytoprotective role of Ca2+-
activated K+ channels in the cardiac inner mitochondrial
membrane. Science 2002; 298: 1029-1033.
Sato T, Saito T, Saegusa N, Nakaya H. Mitochondrial Ca2+-
activated K+ channels in cardiac myocytes: a mechanism of
the cardioprotective effect and modulation by protein
kinase A. Circulation 2005; 111: 198-203.
O'Rourke B. Mitochondrial ion channels. Annu Rev Physiol
2007; 69: 19-49.
Wu SN, Liu SI, Huang MH. Cilostazol, an inhibitor of type 3
phosphodiesterase, stimulates large-conductance, calciumactivated
potassium channels in pituitary GH3 cells and
pheochromocytoma PC12 cells. Endocrinology 2004;145:
1175-1184.